Siklik Guanozin Monofosfat (cGMP)
cGMP, bir guanin bazı, bir riboz şeker ve fosfat grubundan oluşur. Sıradan guanozin monofosfattan (5′-GMP) temel farkı, fosfat grubunun hem ribozun 3′ hem de 5′ karbonlarına ester bağlarıyla bağlanarak oluşturduğu fosfodiester halka yapısıdır. Bu siklik yapı, molekülün kararlılığını ve proteinlere bağlanma özelliğini belirler.
- Moleküler formül: C₁₀H₁₂N₅O₇P
- Moleküler kütle: 345,21 g/mol
- Halka yapısı: 3′,5′-fosfodiester bağı içeren ribofuranoz halkası
- Negatif yük: Fizyolojik pH’da çoklu negatif yük taşır; hücre zarından serbestçi geçemez, etkisini hücre içi kompartmanlarda gösterir.
- Hidroliz duyarlılığı: Halka yapısı, fosfodiesteraz enzimlerine karşı hassastır; hidroliz ürünü olarak 5′-GMP oluşur ve sinyal sonlandırılır.
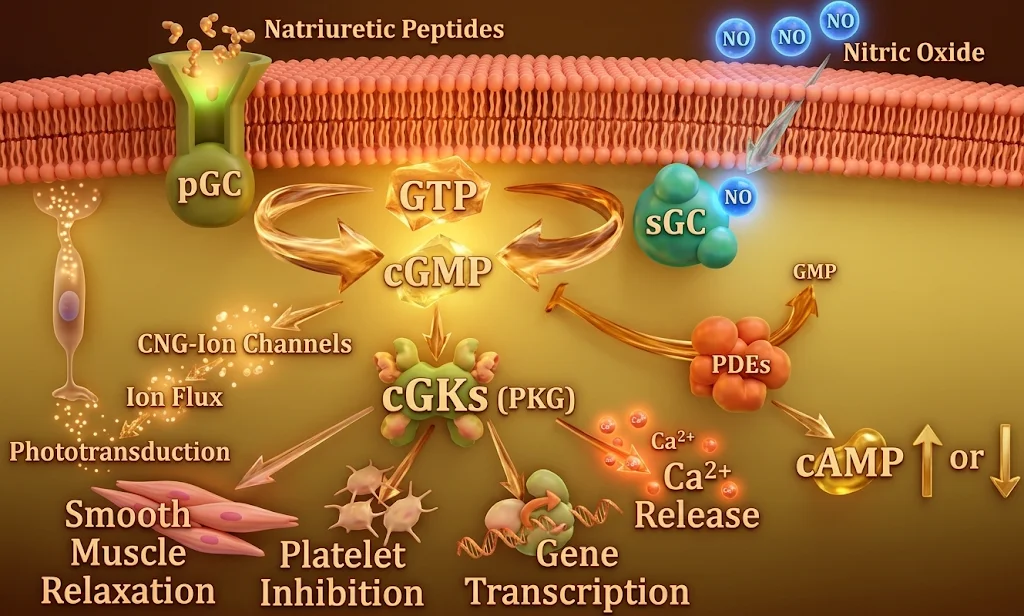
cGMP, guanozin trifosfatın (GTP) guanilat siklaz (GC; guanylyl cyclase, GUCY) enzimleri tarafından 3′,5′-siklik bağa dönüştürülmesiyle üretilir. Mg²⁺ veya Mn²⁺ iyonları kofaktör olarak gereklidir. Membranda ve sitozolde konumlanan iki ana enzim sınıfı vardır:
Heterodimerik yapıya sahiptirler; bir α alt birimi (α1 veya α2) ve bir β alt birimi (β1) içerirler. Sitoplazmada bulunurlar ve nitrik oksit (NO) tarafından aktive edilirler — bu nedenle NO reseptörü olarak da tanımlanırlar.
- Aktivasyon mekanizması: NO, β1 alt birimindeki hem grubunun ferrik demirine (Fe²⁺) bağlanarak hem redoks durumunu değiştirir ve enzim konformasyonunu aktif hâle getirir; enzim aktivitesi bazal düzeye kıyasla yüz katlarca artabilir.
- İnhibitör: Heme bağına affinitesi yüksek olan metilen mavisi gibi bileşikler sGC’yi inhibe eder; bu özellik methemoglobinemi tedavisinde yan etki mekanizması olarak önemlidir.
- Bozucu etkenler: Süperoksit anyonu NO’yu hızla inaktive ederek cGMP üretimini azaltır; oksidatif stres altında sGC hemesi oksitlenebilir ve enzim NO’ya karşı dirençli hâle gelebilir.
Transmembrân proteinleri olup, ekstrasellüler ligandlara bağlanır ve tek polipeptid zinciri üzerinde hem reseptör hem enzim işlevi görür. Ana üyeleri:
- NPR-A (GC-A): Atrial natriüretik peptit (ANP) ve B-tipi natriüretik peptite (BNP) bağlanır.
- NPR-B (GC-B): C-tipi natriüretik peptite (CNP) yanıt verir.
- NPR-C: Enzimatik aktivitesi yoktur; büyük oranda bir “klirens” (izah) reseptörü işlevi görerek ligandları internalize eder.
- ST reseptörleri: Bağırsak epitelyumunda konumlanır ve Escherichia coli üretimi ısıl kararlı enterotoksin (STa) ve endojen guanilin ile aktive olarak cGMP üretimini artırır.
cGMP sinyalinin süresi ve genliği, fosfodiesteraz (PDE) enzimleri tarafından 5′-GMP’ye hidroliz edilmesiyle sonlandırılır. cGMP’yi metabolize eden ana PDE izoenzimleri:
- PDE5: Damar düz kasları, penis kavernozal dokusu, akciğer ve prostat gibi dokularda baskın; cGMP’ye yüksek seçicilik gösterir.
- PDE6: Retina rod ve kon fotoreseptörlerinde; cGMP konsantrasyonunu fototransdüksiyon hızına göre hassas biçimde ayarlar.
- PDE9: cGMP için seçici olup kalp ve beyin dokularında eksprese edilir.
- PDE1, PDE2, PDE3, PDE10, PDE11: cGMP’yi hem substrat hem de allosterik düzenleyici olarak metabolize edebilir veya etkileşime girer.
PDE’lerin kalıtımsal aktivasyon veya inhibitörleri, cGMP düzeyini farmakolojik olarak modüle etmenin en yaygın yoludur.
cGMP, sinyali aşağıdaki etki yerlerine iletir:
En önemli etki yoludur. İki izoformu vardır: PKG-I (PKG Iα ve Iβ) hücre sitozolünde, PKG-II hücre membranına myristolasyon ile bağlıdır (membran-tipi GC’lerle işlevsel olarak eşleşir). cGMP’nin kinazın regülatuar bölgelerine bağlanması, katalitik bölgenin aktive olmasına ve substrat proteinlerin serin/treonin kalıntılarının fosforilasyonuna yol açar. Fosforilasyon altına giren substratlar arasında:
- Düz kas hafif zincir fosfatazı (MLCP) üzerinden düz kas gevşemesi,
- İyon kanalları (BKCa aktivasyonu),
- Fosfoamban, troponin I, Rho-kinaz gibi kalsiyum duyarlılık düzenleyicileri,
- Transkripsiyon faktörleri (örn. CREB üzerinden uzun süreli etkiler) yer alır.
Rod ve kon hücrelerindeki cGMP kapılı kation kanalları, cGMP’ye doğrudan bağlanarak açılır. Fototransdüksiyon zincirinde ışık, fosfodiesteraz-6’yı aktive edip cGMP’yi düşürerek kanalların kapanmasına ve hücre hiperpolarizasyonuna neden olur.
cGMP, bazı PDE’lerin (örn. PDE2, PDE5) allosterik bağlanma bölgelerine bağlanarak bu enzimlerin kendi aktivitesini ya da cAMP’ye karşı afinitesini değiştirir; böylece siklik nükleotidler arasında çapraz düzenleme (cross-talk) sağlanır.
Emerjan çalışmalar, cGMP’nin bazı proteinlerle (örn. bazı transkripsiyon faktörleri, modülasyon proteinleri) kinaz aracılığı olmaksızın da etkileşebildiğini göstermektedir.
NO–sGC–cGMP–PKG ekseni, vasküler düz kaslarda hafif zincirin defosforilasyonu yoluyla gevşeme sağlar; sistolik/diyastolik tonusun düzenlenmesinde temel mekanizmadır. Endotel fonksiyon bozukluğu ve NO biyoyararlanımının azalması, hipertansiyon, ateroskleroz ve diyabetik vaskülopatinin ortak patofizyolojik kökenlerindendir. Natriüretik peptidlerin cGMP üzerinden natriürez, diürez, vazodilatasyon ve renin-anjiyotensin-aldosteron sisteminin baskılanmasında merkezî rol oynadıkları kanıtlanmıştır.
Retinada karanlıkta yüksek cGMP düzeyi CNG kanallarını açık tutar ve “karanlık akımı” sürdürür. Işık → rodopsin aktivasyonu → transdüsin → PDE6 aktivasyonu → cGMP düşüşü → kanal kapanması → hiperpolarizasyon şeklindeki zincir, görme duyusunun moleküler temelidir.
cGMP, ince bağırsak epitel hücrelerinde CFTR klorür kanalı ve Na⁺/H⁺ değişim sistemleri üzerinden klorür ve su sekresyonunu artırır; enterotoksinlerin ishale yol açması bu mekanizmayla gerçekleşir. Linaklotid gibi guanilat siklaz-C agonistleri, kronik idiyopatik konstipasyonda bu yolağı terapötik olarak kullanır.
cGMP, santral ve periferik sinir sisteminde uzun süreli potentiasyon (LTP), nöral plastisite, nocisepşın modülasyonu ve glial hücre işlevlerine katılır. NOS/GC ekseni, öğrenme ve bellek süreçlerinde rol oynayan hipokampal sinyal iletiminde araştırılmaktadır.
cGMP, trombosit agregasyonunu baskılar; NO’nun antitrombotik etkisinin moleküler aracısıdır. Makrofaj ve mikroglial hücrelerde inflamatuar yanıtın tonik inhibisyonunda görev alır.
PKG aracılı sinyal iletimi, fibrozis karşıtı etkiler, düz kas hücre proliferasyonunun baskılanması ve endotel hücre yaşamsallığının desteklenmesiyle ilişkilidir. cGMP yolağındaki bozulmalar pulmoner arter hipertansiyonu, kalp yetmezliği progresyonu ve malign transformasyon çalışmalarında değerlendirilmektedir.
- Riyosiguat: NO’dan bağımsız olarak okside sGC’yi aktive eder (stimülan); pulmoner arter hipertansiyonu ve kronik tromboembolik pulmoner hipertansiyonda endikedir. Fosfodiesteraz-5 inhibitörleri ile birlikte kullanımı, aşırı hipotansiyon riski nedeniyle kontrendikedir.
- Verisiguat: sGC’yi doğrudan stimüle eder (NO bağımlı); kronik kalp yetmezliğinde azaltılan ölüm ve hastaneye yatış riski göstermiştir.
- Sinemakant (Bay 41-2272, Bay 63-2521): Deneysel stimülan ajanlardır.
Sildenafil, tadalafil, vardenafil, avanafil ve mirodenafil, cGMP’nin hidrolizini engelleyerek intraselüler cGMP düzeyini yükseltir:
- Erektil disfonksiyon: Seksüel stimülasyonla NO salınımını takiben kavernozal düz kas gevşemesini güçlendirir.
- Pulmoner arter hipertansiyonu: Pulmoner vazodilatasyon sağlar.
- Benign prostat hiperplazisi: Alt üriner sistem semptomlarını hafifletir.
- Raynaud fenomeni ve yüksek irtifalı pulmoner ödem: Off-label kullanımlardır.
İlaç etkileşimi: Organik nitratlarla (nitrogliserin, izosorbid) birlikte kullanımı sGC aktivasyonu + PDE5 inhibisyonu birleşimiyle cGMP’de kontrolsüz artışa ve potansiyel olarak yaşamı tehdit eden hipotansiyona yol açtığından mutlak kontrendikedir.
Linaklotid ve plekanatid, bağırsak lümen yüzeyindeki GC-C’yi aktive ederek luminal cGMP artışı, klorür sekresyonu ve intestinal motilite düzenlenmesi sağlar; irritabl bağırsak sendromu ile konstipasyon ve kronik idiyopatik konstipasyonda kullanılır. Sistemik emilimleri yok denecek kadar azdır.
8-Br-cGMP, dibutil cGMP ve Rp-cGMPS gibi hücre geçirgen veya inhibiter analoglar, deneysel farmakolojide PKG yolağının karakterizasyonunda standart araçlardır. Metilen mavisi, sGC inhibisyonu yoluyla yan etki veya off-label indikasyonlarda cGMP yolağını modüle eder.
- Erektil disfonksiyon: NO-cGMP yolağındaki bozulmaların (diyabet, ateroskleroz, nörolojik defisit) farmakolojik aynası olarak kavramsallaştırılır.
- Pulmoner hipertansiyon: NO yolağı fonksiyon kaybı ve PDE5 ekspresyonundaki patolojik artış, hedefe yönelik tedavinin dayandığı zemindir.
- Kalp yetmezliği: “NO-cGMP eksikliği” paradigması, riyosiguat/verisiguat gibi ajanların geliştirilmesine öncülük etmiştir.
- Konjenital sGC mutasyonları: Çocukluk çağında mide motilite bozukluğu ve pulmoner hipertansiyonla seyreden otozomal resesif tablolarla ilişkilidir.
- Retina hastalıkları: PDE6 mutasyonları retinitis pigmentoza ve konjenital durma nistagmusunun nedenleri arasındadır.
- Nörodejeneratif hastalık araştırmaları: PDE9 inhibitörleri ve sGC stimülanlarının Alzheimer hastalığı ve beyin kan akımı bozukluklarındaki potansiyeli aktif araştırma konusudur.
Doku ve plazma cGMP düzeyleri şu yöntemlerle ölçülür: siklik nükleotide özgü radyoimmünoassay (RIA), ELISA (mono/monospesifik antikor temelli), yüksek performanslı sıvı kromatografisi kütle spektrometrisi (HPLC-MS/MS) ve floresan rezonans enerji transferi (FRET) temelli canlı hücre biyosensörleri (örn. cGMP indikatör proteini cGi). Ölçümde dikkat edilecek noktalar: fosfodiesteraz inhibitörü içeren örnekleme tamponu kullanımı, hızlı dekantasyon ve -80 °C’de saklama; çünkü cGMP, örnekleme sonrası hızla 5′-GMP’ye dönüşebilir.