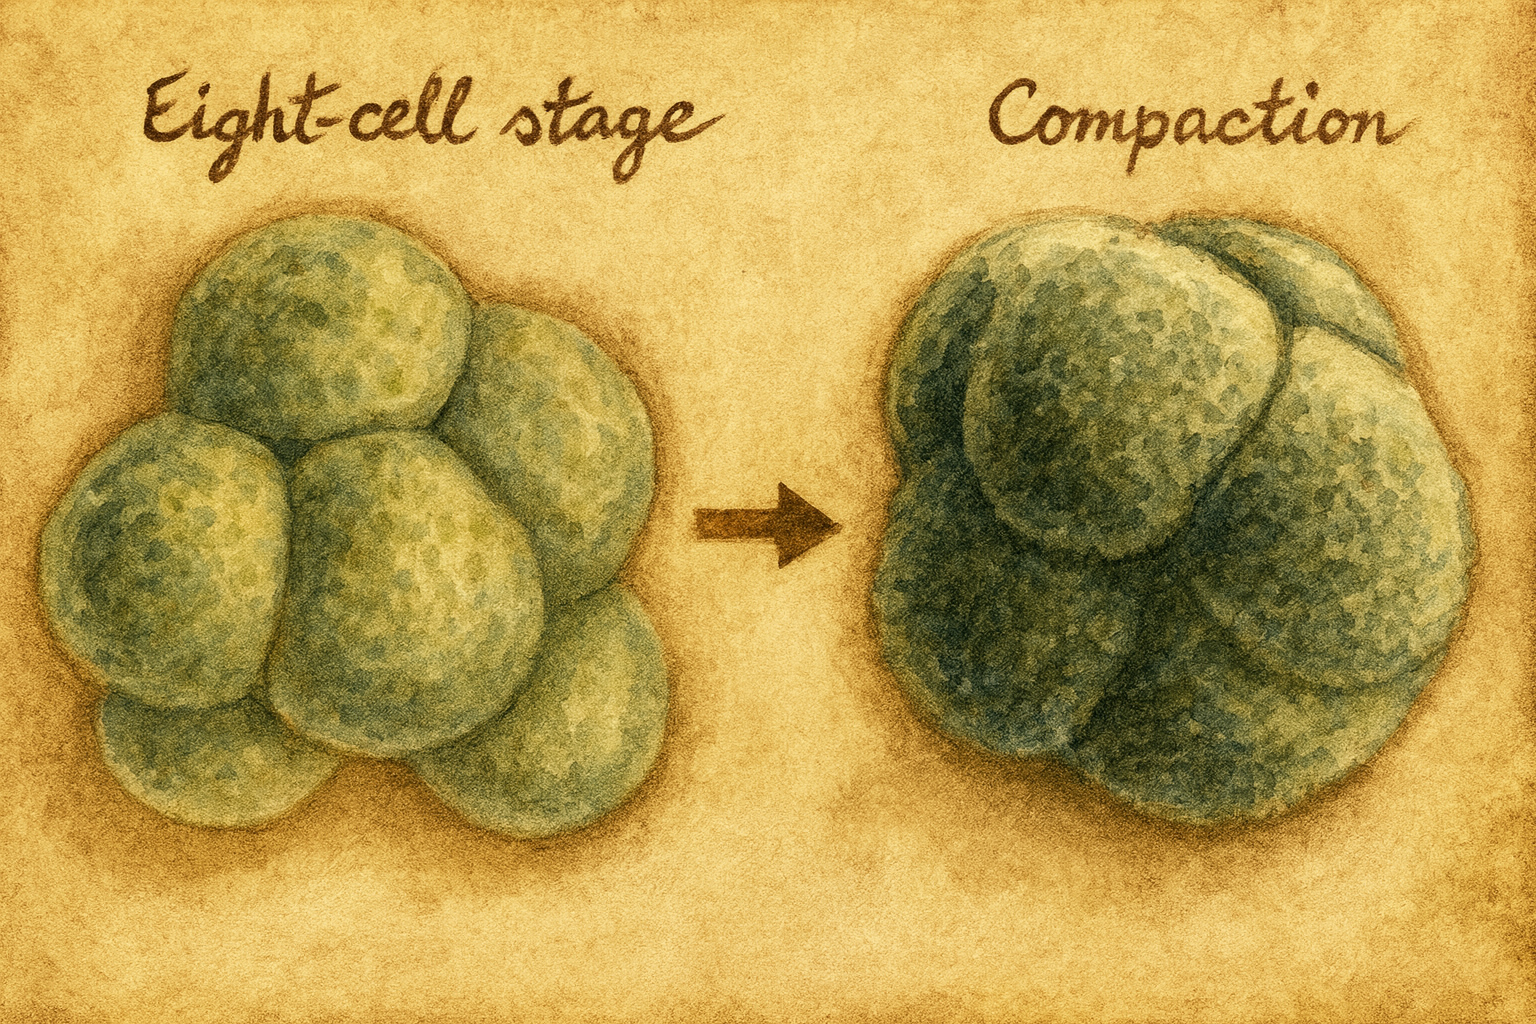
Kışın erken saatleri, 20. yüzyıl ortasının küçük bir histoloji odasında başlar hikâye: memeli yumurtasının kültüründe süreklilik sağlamak, hücrenin kendi ısrarcı ritmini laboratuvarda yakalamak pek çok araştırmacı için hem teknik bir meydan okuma hem de teorik bir vaatti. Bu vaatte en güçlü iz, morulanın bir noktasında hücrelerin gevşek kümelenmeden pürüzsüz bir kütleye dönüşmesiydi; camın üzerinde beliren bu kısa sahne, “kompaksiyon” denen o ad vermesi zor ama seyredeni suskun bırakan geçişti. Erken dönem memeli embriyolojisinin büyük isimleri—örneğin chimerik farelerin kurucu deneylerini yapan Andrzej K. Tarkowski ve onu izleyen birçok kurucu kuşak—mikroskobun altında gördüklerini teknik bir dilde toplarken, “bir araya getirme, birlikte tutturma” anlamını taşıyan Latince kökün tarihî mirası da yavaşça terimin çekirdeğine yerleşiyordu: com- (“birlikte”) ve pangere (“tutturmak”)—compactio.
1970’lerin sonu ile 1980’lerin başında, Cambridge’nin, Oxford’un ve North America’daki gelişim biyolojisi merkezlerinin sessiz odalarında kompaksiyonun ilk sistematik çerçevesi çizilmeye başladı. Fare morulasında iki soyun—dış trofoektoderm ile iç hücre kitlesinin—temellerinin hangi fiziksel ve biyokimyasal işaretlerle atıldığı sorusu, Johnson ve Ziomek’in “dış–iç” modeliyle belirginleşti: dışta giderek epitel özellik kazanan bir halka, içte ise pluripotent bir çekirdek. Aynı yıllarda Tim Fleming, trophectoderm ve inner cell mass (ICM) tahsisinin nicel doğasını ölçümlemeye girişti; cam lam üzerine düşen bir embriyonun, hangi hızda, hangi temas açılarıyla, hangi simetri kırılmalarıyla pürüzsüzleştiğini saat ve cetvelle bilimsel cümlelere çevirdi. Bu, kompaksiyonu yalnızca “görülen bir sahne” olmaktan çıkarıp ölçülebilir bir düzen değişimi, bir morfodinamik süreç haline getiren ilk kararlı adımdı.
1980’lerin ikinci yarısında, hücrelerin birbirine “nasıl” tutunduğu sorusu kadherinler sahneye çıktığında yeni bir yoğunluk kazandı. Masato Takeichi’nin kadherin ailesini tanımlayan çalışmaları ve bunu memeli embriyosuna taşıyan pek çok laboratuvar, kompaksiyonun yüzeydeki parıltısının altındaki kimyasal dikişi görünür kıldı: E-kadherin (CDH1) kümeleniyor, katenin kompleksi üzerinden aktin korteksine bağlanıyor, temas bölgeleri güç kazanıyordu. Birkaç yıl sonra, E-kadherin eksikliğinin fare preimplantasyon gelişiminde ölümcül olup TE epitelizasyonunu bozduğunu gösteren genetik kanıtlar, “kompaksiyon = adezyon + sitoskeletal bağ” denklemini deney hayvanının kaderiyle mühürledi. Bu aynı zamanda kompaksiyonu “fenomen” olmaktan çıkarıp “zorunlu mimarî eşik” olarak adlandırabilecek güvendi.
1990’lar ve 2000’lerin başında kompaksiyon haritasına iki geniş cadde daha eklendi: sıkı bağlantılar ve polarite. ZO-1, occludin ve claudin ailesinin trofoektodermde kurduğu bariyer, blastosöl sıvısının tutulması için gerekliydi; bir başka deyişle kompaksiyon, yakın izleğinde epitelin sızdırmazlığını örgütlüyor, blastosistin hidrolik fiziğini mümkün kılıyordu. Aynı dönemde PAR kompleksi (PAR-3, PAR-6, aPKC) dış hücrelerde apikal bir kubbe—mikrovilluslarla bezeli bir kimlik—kurarak polaritenin hücresel signatürünü çizdi. Bu çizgiyi fareden insana genişleten çalışmalar, dış hücrelerin apikal-bazal eksen kazandıkça iç hücrelerden ayrıştığını, bir mikro-epitelin gizli şablonunun kompaksiyon anında döşendiğini gösterdi.
2000’lerin sonu ile 2010’ların başında, kaderin harita kalemi Hippo sinyal yoluna geçti. Nishioka ve arkadaşlarının fare morulasında LATS–YAP/TAZ–TEAD ekseni üzerinden gösterdiği prensip, kompaksiyon sırasında kurulan apikal korteks bütünlüğünün yalnızca mekaniği değil, kaderi de belirlediğini anlattı: dış hücrede apikal alan ve zayıf Hippo etkinliği YAP/TAZ’ı çekirdeğe taşır, TEAD4 ile birleşen bu kompleks CDX2 gibi trofoektoderm belirteçlerini yazar; iç hücrede ise güçlü Hippo etkinliği YAP/TAZ’ı sitoplazmada hapseder, OCT4/NANOG/SOX2 merkezli pluripotensi programı güçlenir. Böylece “tutturmak” yalnızca hücreleri birbirine tutturmak değil, bir hücre yazgısını da genom üzerinde tutturmak anlamına geldi.
Bu biyokimyasal hikâyenin içine, 2010’ların ortasında mekanik şiir döküldü: canlı görüntülemede aktomyozinin apikal kortekste pulsatif—nabız atar gibi—kasılmalar ürettiği ve bu kasılmaların kompaksiyonu ileri ittiği gösterildi. Fare embriyosunun yüzeyinde zamanla genişleyen aktin halkaları, morulanın sanki yakası iliklenir gibi kapanmasını sağlıyor, dış tabakanın dikiş yerlerini “fermuar” gibi çekiyordu. Aynı anda mikroaspirasyon ve yüzey gerilimi ölçümleri, temas açısının nasıl büyüdüğünü, yüzey eğriliğinin nasıl azaldığını sayılarla yakaladı. Diferansiyel adezyon hipotezi ve doku yüzey gerilimi kavramı, bu sayıları teorik bir cümleye dönüştürdü: embriyo, adezyon ve kontraktilitenin ortak artışıyla daha düşük enerjiye sahip bir konfigürasyona akıyor; fizik, kaderin sessiz orta yazarı oluyor.
İnsan embriyolojisi cephesinde, tek hücreli RNA dizileme çalışmaları iç hücre kitlesi ile trofoektodermin transkripsiyonel ayrışmasını haritaladı; SOX2 gibi pluripotensi faktörlerinin bağlanma dinamikleri ve ömrü, dört hücreden itibaren kaderi öngören incelikli ipuçları taşıyordu. Aynı yıllarda, in vitro fertilizasyon kliniklerinde zaman atlamalı görüntüleme (time-lapse) sistemleri kompaksiyonun başlama anını (tC), süresini ve homojenliğini embriyo seçiminde kullanılabilir morfokinetik imzalar haline getirdi. Erken ve eşgüdümlü kompaksiyonun genellikle daha iyi blastosist bütünlüğü ve implantasyon potansiyeliyle ilişkili olduğu; geç, mozaik veya parçalı kompaksiyon paternlerinin ise sıklıkla anöploidi ve zayıf TE/ICM ayrışımıyla seyrettiği yönünde geniş bir klinik literatür birikti. Burada elbette türler arası aktarımın sınırları, etik ve yasal kısıtlar kadar belirleyiciydi; insan embriyosunda moleküler müdahaleye ilişkin pencereler dar, yorumu dikkat gerektiriyordu.
Bugünün laboratuvarında kompaksiyon artık yalnızca “bir sahne” değil, çok ölçekli bir nodo: tek hücreli transkriptom ve epigenom atlasları dış–iç ayrışmayı süreklileşen bir manzara olarak resmederken, süper-çözünürlüklü mikroskopi apikal korteksin dansını molekül yoğunluklarıyla eşliyor; mekanogenomik yaklaşımlar kadherin bağlarının güçlenmesini kuvvet-bağımlı bir kimyaya, Hippo’nun çekirdeğe uzanan parmak izini de şekil-bağımlı bir transkripsiyona çeviriyor. İnsan ve sığır embriyolarında türler arası zamanlama farklarını, farklı implantasyon stratejilerinin nasıl “kompaksiyon çözümleri” geliştirdiğini karşılaştırmalı biyolojiyle okumak artık mümkün. İyon pompalarının (Na⁺/K⁺-ATPaz) ve aquaporinlerin trofoektoderm epitelinde kurduğu gradyan, sıkı bağlantıların çizdiği bariyerle birlikte blastosölün hidrolik genişlemesini yönetirken; yapay zekâ destekli görüntü analizi, temas açılarını, hücresel Voronoi hacimlerini ve pürüzsüzleşme kinetiğini bir tıkla ölçüyor.
Kompaksiyonun güncel araştırma başlıkları üç eksende yoğunlaşıyor: (i) dış hücre apikal alanının nanometre ölçeğindeki örgüsünü—PAR kompleksi, aPKC kümelenmesi, mikrovillus topolojisi—canlı ve uzun vadeli izleme; (ii) Hippo-YAP/TAZ sinyallemesinin mekanik girdilerle anlık bağını gösterebilen raporlayıcı sistemler ve çekirdek-sitoplazma trafik hızının kader kararlarına etkisi; (iii) insan embriyosunda etik sınırları gözeten, çoğunlukla gözlemsel ama istatistiksel gücü yüksek morfokinetik çalışmalar ile tek hücreli -omiklerin birlikte kullanımı. Bu üç eksen, kompaksiyonu “Latince kökünün vaadi”ne uygun biçimde, gelişimin mimarîsini bir arada tutan dikiş olarak yeniden tanımlar: birlikte tutturmak yalnızca hücrelerin değil, fizik ile genetiğin de.
Ve lam üzerine düşen o ilk ışık hâlâ aynı sahneyi açar: blastomerler birbirine yaklaşır, yüzey pürüzsüzleşir, dış hücrelerin kenarında görünmez bir fermuar çekilir; içte küçük bir gölge yoğunlaşır. Birkaç on yıl önce bu gölgenin “ne” olduğuna dair cümleler eksikti, bugün ise her cümlenin arkasında bir sayı, her sayının arkasında görkemli ama hassas bir moleküler koreografi var. Kompaksiyonun keşfi, dolayısıyla, tek bir anın değil; Johnson ve Ziomek’in çiziğiyle başlayan, Fleming’in ölçüleriyle derinleşen, kadherinin dikişiyle sıkılaşan, Hippo’nun imzasıyla nizam bulan ve aktomyozinin nabzıyla ileri taşınan bir bilim tarihinin adıdır.